

Interleukins, Chemokines og Tumor Necrosis Factor Superfamily Ligands í meingerð Vestur-Nílar veirusýkingar
Sep 08, 2023
Ágrip: West Nile veira (WNV) er moskítóberinn sýkill sem getur leitt til heilabólgu og dauða hjá næmum hýslum. Cytókín gegna mikilvægu hlutverki í bólgu og ónæmi sem svar við WNV sýkingu. Múslíkön gefa vísbendingar um að sum cýtókín bjóða upp á vörn gegn bráðri WNV sýkingu og aðstoða við veiruúthreinsun, á meðan önnur gegna margþættu hlutverki í WNV taugasjúkdómamyndun og ónæmismiðluðum vefskemmdum. Þessi grein miðar að því að veita uppfærða úttekt á tjáningarmynstri frumuefna í mönnum og tilraunadýralíkönum af WNV sýkingum. Hér lýsum við yfir interleukin, chemokines og æxlisdrep þáttar yfirfjölskyldu bindla sem tengjast WNV sýkingu og meingerð og lýsum flóknu hlutverki sem þeir gegna við að miðla bæði vernd og meinafræði miðtaugakerfis meðan á eða eftir veiruúthreinsun stendur. Með því að skilja hlutverk þessara cýtókína við WNV-taugaífarandi sýkingu, getum við þróað meðferðarmöguleika sem miða að því að móta þessar ónæmissameindir til að draga úr taugabólgu og bæta afkomu sjúklinga.
Lykilorð: West Nile veira; cýtókín; interleukín; chemokines; æxlisdrep þáttar yfirfjölskyldu bindlar; sýkingarmódel

Kínversk jurt cistanche planta - Antitumor
1. Inngangur
West Nile veira (WNV) er einþátta RNA veira með jákvæðum skilningi sem tilheyrir japanska heilabólga serocomplex, ættkvísl Flavivirus, fjölskyldu Flaviviridae [1]. Lífsferill þess nær aðallega til fugla og moskítóflugna, en menn, hestar og önnur hryggdýr eru talin tilfallandi hýsildýr [2]. WNV erfðamengi er þýtt í eitt fjölpeptíð og unnið í samhliða og eftir þýðingu í tíu prótein: þrjú uppbygging (capsid C, himnuforveri prM og hjúp E), sem mynda veiruna; sjö prótein sem ekki eru uppbyggt (NS1, NS2A, NS2B, NS3, NS4A, 2K, NS4B og NS5) sem taka þátt í veiruafritunarferlinu, forðast meðfædda ónæmi hýsilsins og WNV meingerð [3]; og eitt peptíð 2K, sem gegnir hlutverki við að endurraða umfrymishimnum og Golgi verslun með NS4A próteinið [4]. Næmi fyrir WNV er mjög breytilegt meðal hýsils þess [5]. Meirihluti WNV sýkinga í mönnum eru annað hvort einkennalausar eða vægar og koma fram með höfuðverk, máttleysi og/eða hita [6]. Hins vegar mun lítið hlutfall WNV-sýktra sjúklinga (minna en 1% [7]) þróa með sér taugaífarandi sjúkdóm, þar með talið heilahimnubólgu, heilabólgu eða bráða slaka lömun, þar sem dauði á sér stað í 10-30% tilvika [8,9] . Langvarandi líkamlegar og taugavitrænar afleiðingar, þar með talið máttleysi, þreyta, vöðvaverkir, minni eða heyrnartap, þunglyndi og hreyfitruflanir, geta einnig komið fram hjá 30 til 60% sjúklinga sem fá klínískan sjúkdóm [9-11]. Þrátt fyrir að nú sé litið á það sem forgangs dýrasjúkdóma fyrir bandaríska íbúa [12], eru engar staðlaðar meðferðarleiðbeiningar utan stuðningsmeðferðar, né er FDA-samþykkt lyf eða bóluefni fáanlegt til að meðhöndla eða koma í veg fyrir WNV taugaífarandi sjúkdóm, í sömu röð [8]. WNV meingerð einkennist af þremur áföngum: (1) frumstigi húðsýkingar og dreifist til staðbundinna tæmandi eitla eftir bit af sýktri moskítóflugu, (2) veiruútbreiðslu til útlægra líffæra og (3) innrás í miðlæga líffæri. taugakerfi (CNS) [13]. Til að berjast gegn innrás WNV, virkjar spendýrahýsillinn þrjár varnarlínur: húðina og meðfædda ónæmið á fyrstu stigum og síðan aðlögunarhæfni (húmoral og frumu) ónæmi á síðari stigum [13,14]. Cýtókín eru merkjaprótein sem eru tjáð af mörgum ónæmis- og ónæmisfrumum spendýra (Mynd 1). Örvun þeirra og stjórnun eru nátengd WNV eftirmyndun á fyrstu stigum sýkingar [15-20]. Þó að þeir séu uppteknir í öllum þremur varnarlínunum gegn WNV, stuðla þeir einnig að ónæmismiðluðum vefskemmdum í heilanum. Meðal þessara cýtókína eru interleukin (ILs), chemokines og tumor necrosis factor superfamily (TNFSF) bindlar stórir þátttakendur í ónæmi gegn WNV, eins og sést af umritunarsniði á WNV-sýktum frumum og vefjum með því að nota DNA örfylki eða RNA raðgreiningu [21]. Nokkrar umsagnir hafa varpað ljósi á hlutverk þeirra í flaviviral sýkingum almennt [22-24] og í sérstökum flaviviral sjúkdómum, þar á meðal dengue [25,26] og Zika [27] vírusum. Náskyld flaviveira framkalla mismunandi ónæmismótandi snið í hýslum sínum [28-30] og mótvæga veirueyðandi ferli á mismunandi hátt [31]; Hins vegar virðist WNV meingerð hafa einstaka hliðar samanborið við aðrar taugakerfisveirur [28,32], sem verður fjallað um í þessari umfjöllun. Þess vegna er mikilvægt að fjalla um hlutverk cýtókína í sérstöku samhengi WNV sýkingar.
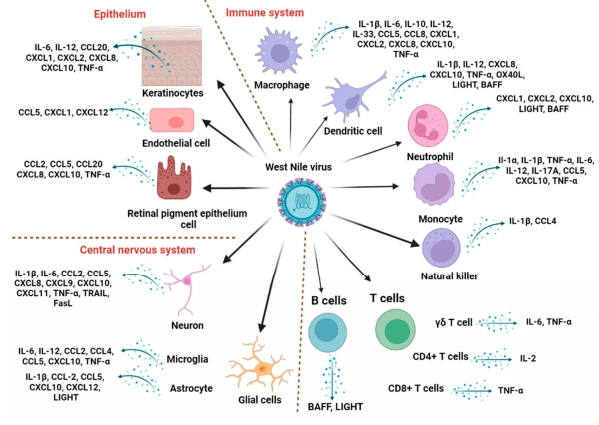
Mynd 1. Frumumarkmið Vestur-Nílarveiru og samsvarandi frumuviðbragð í spendýrum. Myndskreytingin var búin til á Biorender.com. Skammstafanir: BAFF: B-frumuvirkjandi þáttur; FasL: Fas bindill; TNF-: æxlisdrep þáttur -, TRAIL: TNF-tengdur frumufrumu-örvandi bindill.
Það eru vaxandi vísbendingar um að ónæmissvörun hýsilsins, knúin áfram af cýtókínum, gegni lykilhlutverki í meingerð WNV og afleiðingum sjúkdómsins. Í fyrsta lagi styðja klínísk gögn að mismunandi frumufrumusnið, allt eftir kyni [33], heilsufarsástandi [34] og fjölbreytni manna í þessum ónæmiskóðunandi genum [35-37] tengist mismunandi niðurstöðum sýkingarinnar og hvetur þannig til notkunar tengdra lífmerkja til að spá fyrir um alvarleika WNV sjúkdóms í klínísku umhverfi [33]. Í öðru lagi, með því að nota cýtókín sem örva eða hindra áhrif þeirra með lyfjafræðilegum eða erfðafræðilegum hætti í múslíkönum sýndi getu þeirra til að breyta algjörlega WNV-tengdum svipgerðum sjúkdóma [16,38-49]. Þess vegna getur bættur skilningur á þátttöku cýtókína í meingerð WNV ekki aðeins hjálpað til við að hámarka greiningu og horfur heldur einnig leiðbeint rannsóknum á ónæmisstýrandi aðferðum til að meðhöndla WNV-framkallaða taugasjúkdóma. Í þessari yfirferð tökum við saman niðurstöður úr klínískum rannsóknum sem og tilraunum sem gerðar hafa verið á síðustu tveimur áratugum með því að nota in vitro og in vivo WNV sýkingarlíkön til að rifja upp ILs, chemokines og TNFSF bindlar sem taka þátt í WNV sýkingu, gefa til kynna þær sem hafa þekkt þýðingu í WNV meingerð, og auðkenna umsækjendur sem þurfa frekari rannsóknir til að leyna mikilvægi þeirra sem lækningaleg markmið.

Kostir cistanche tubulosa-antitumor
2. Interleukins (ILs) í WNV sýkingu
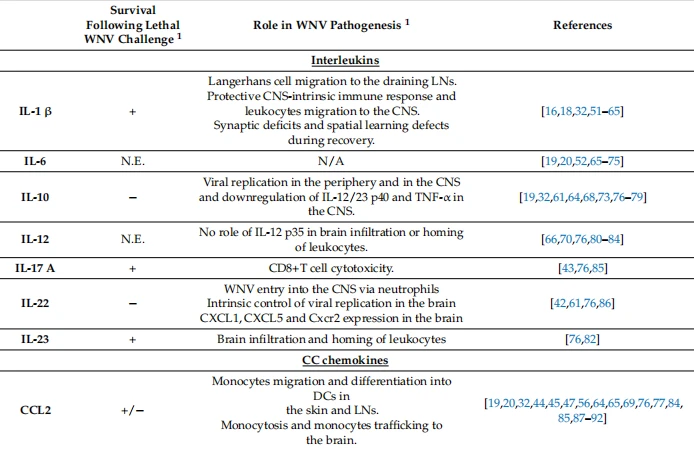
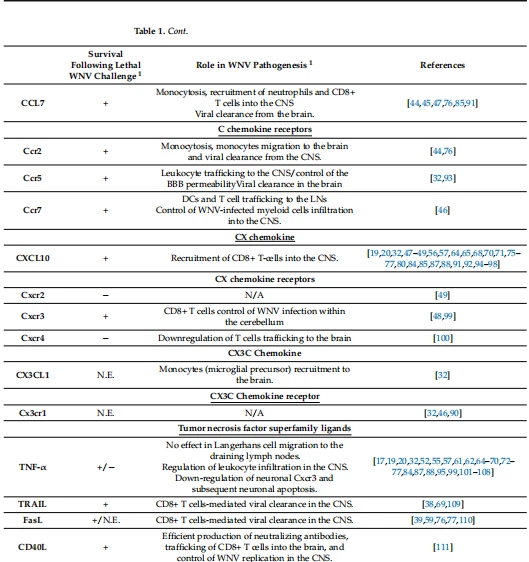
IL eru prótein sem stilla frumuvöxt, aðgreiningu og virkjun meðan á veirueyðandi svörun stendur [50]. WNV veldur losun að minnsta kosti 22 ILs í spendýrahýslum (tafla S1). Hingað til hafa IL-1, IL-6, IL-10, IL-12, IL-17A, IL-22 og IL{{ 9}} hafa verið rannsökuð beint (tafla 1), á meðan litlar upplýsingar eru tiltækar um eftirstöðvar IL sem taka þátt í ónæmissvörun við WNV sýkingu. Tafla 1. Yfirlit yfir interleukin, chemokines, chemokine receptors og tumor necrosis factor bindlar sem koma af stað í kjölfar West Nile veiru (WNV) sýkingar, en meingerð þeirra hefur verið rannsökuð í múslíkönum in vivo.
2.1. Interleukin-1 Fjölskylda
Eins og er eru 11 frumudrep talin meðlimir IL-1 fjölskyldunnar: IL-1, IL-1, IL-1 viðtakamótlyfið [IL-1ra], IL-18, IL-33, IL-36, IL-36, IL-36, IL-36ra, IL-37, og IL-38 [113,114]. Meðal þeirra, IL-1 [19,76,87,115], IL-1 [10,16,51–53,80,94,116], IL-1ra [16,29,77 ], IL-18 [117] og IL-33 [118] eru þekkt fyrir að losna sem svar við WNV sýkingu.
IL-1 er ákaflega öflugt bólgueyðandi frumudrep sem kemur af stað sem svar við WNV sýkingu bæði in vitro og in vivo, í jaðri og miðtaugakerfi (tafla S1). Hlutverk IL-1 í WNV sýkingu hefur aðallega verið rannsakað með múslíkönum sem skortir IL-1R1 og geta ekki svarað IL-1, IL-1 eða IL{ {7}}ra [16,54,66,115]. IL-1R1 merkjagjöf veitti músum vernd gegn WNV sjúkdómi og dánartíðni [16]. Meðan á WNV heilabólgu stóð snemma stjórnaði IL-1R1 veiruafritun og síðari frumufrumu í taugafrumum [16,115]. Ennfremur stjórnaði IL-1 íferð hvítfrumna sem og svörun T-frumna í miðtaugakerfi [54,66,115] og stöðvaði bólgu með því að minnka bólgueyðandi frumufrumur, eins og TNF- og IL-6 [16] og chemokines, eins og CCL2 og CCL5 [16,51,54]. Inndæling á WNV innankúpu í villigerð C57BL/6 músum leiddi til mótsagnakenndra niðurstaðna varðandi bein áhrif IL-1 á afritun veiru í heila. Þó að IL-1 hafi ekki bein áhrif á veiruafritun innan miðtaugakerfisins í sumum rannsóknum [51,53,115], reyndist IL-1 miðla innri veirutakmörkun í miðtaugakerfi í annarri rannsókn [16]. Mismunurinn á milli þessara rannsókna þrátt fyrir notkun á sama líkani af sýkingu gæti að hluta til skýrst af muninum á veirustofnum sem notaðir voru til að smita mýsnar. Bólgueyðandi IL-1 og bólgueyðandi IL-1ra cýtókíntjáningarmynstur og hlutverk við WNV sýkingu eru enn ekki ljós. Í sermi úr mönnum var tjáning IL-1ra breytileg hjá WNV-sýktum foreinkennalausum og einkennalausum gjöfum [29], en stjórnaðist við bráða WNV sýkingu [16,34]. Þó að engin rannsókn á mönnum hafi enn greint frá IL-1-reglu við náttúrulega sýkingu í WNV, þá er mótun IL-1 við WNV-sýkingu mismunandi eftir rannsóknum sem nota tilraunalíkön (tafla S1). IL-1 er lykilmaður í snemma, bráðri og alvarlegri WNV meinmyndun. Reyndar er IL-1 eitt af elstu frumuefnum sem greindust eftir sýkt moskítóbit í músalíkönum [22,62,119]. Ennfremur, þessi frumu-miðlaða húðþekjufruma (DC) og Langerhans frumur flytja frá húðþekju til staðbundinna tæmandi eitla [22,62,119]. Í músaheila var IL-1 seytt á bráða fasanum, aðallega af innsnúningi/íbúandi átfrumum [54,63], og jafnvel síðar við bata, aðallega af stjarnfrumum [63]. Núverandi sönnunargögn sýna að IL-1 gegnir tvíþættu hlutverki við sjúkdóm af völdum WNV, að vera verndandi á bráðastiginu og ýta undir taugasjúkdóma til lengri tíma litið. Mýs skortir bæði IL-1 merkjasendingar og apoptosis-tengd flekkalíkt prótein sem inniheldur C-terminal caspase recruitment domain (ASC), sem framkallar caspasa-1-háð bólgueyðandi virkjun og IL{{76} } framleiðslu, reyndust auka WNV veiru titra og alvarleika sjúkdómsins sérstaklega í miðtaugakerfi [16,51]. Ennfremur, hjá mönnum með sögu um einkennalausa eða alvarlega WNV sýkingu, var minnkuð IL-1 örvun í einkjarna frumum í útlægum blóði og átfrumum einkenni alvarlegs sjúkdóms [94]. Hjá blóðgjöfum sem reyndust jákvætt fyrir WNV RNA eftir hefðbundna blóðskimun, var IL-1 hækkað í blóðvökva í sex mánuði eftir upphaflega blóðgjöf og var í öfugri fylgni við WNV RNA álag [16]. Í músum, slík viðvarandi IL-1 oftjáning, framkölluð sérstaklega af NOD-líkum viðtaka-pýrín-innihaldandi próteinum 3 (NLRP3) inflammasome klofningi í stjarnfrumur eftir batatímabil WNV heilabólgu [16,22,63,119], leiddi til gallaðs rýmisnáms og taugamótunarbata [53,63]. Þannig er óviðeigandi NLRP3 inflammasome virkjun og IL-1 seyting í heila nú talin trúverðug leið til að þróa langtíma taugakvilla eftir WNV sýkingu [120]. IL-18 er einnig bólgueyðandi frumudrep sem framleitt er í kjölfar bólgueyðandi virkjunar [121,122]. WNV sýking af frumeiningum sem unnin eru af einfrumum úr mönnum eða umbreyttri taugafrumufrumulínu úr mönnum (SK-N-SH, ATCC HTB-11™) jók ekki IL-18 framleiðslu [52,117]. Hins vegar var IL-18 uppstýrt í milta og lungnavef WNV-sýktra músa [76]. Mælt er með IL-18 til að auka ónæmissjúkdómamyndun DENV [123], en engar rannsóknir hafa verið gerðar enn til að prófa þetta meðan á WNV sýkingu stendur. Annar meðlimur IL-1 fjölskyldunnar, IL-33, var stýrður í milta átfrumum af WNV-sýktum músum [118]. IL-33 boð í gegnum ST2 viðtakann geta kallað fram bólgueyðandi og bólgueyðandi svörun [124,125]. Almennt, í veirusýkingum, er IL-33 talið verndarmiðill með því að auka CD8+ T frumu svörun [126] og draga úr veiruheilabólgu með því að minnka tjáningu iNOS í miðtaugakerfi [127].
Þess vegna, með þessum skilningi, gæti stuðlað að virkni eða framleiðslu þessa cýtókíns við WNV sýkingu haft lækningalega kosti. Meiri vinnu er þörf til að rannsaka virkni þessa frumu í samhengi við WNV sýkingu.

Superman jurtir cistanche—Anti-bólgueyðandi
2.2. Interleukin 6 Fjölskylda
IL-6 er pleiotropic cýtókín sem tekur þátt í mörgum líffræðilegum ferlum, þar á meðal ónæmissvörun, blóðmyndun, beinefnaskipti og fósturþroska [128]. Það er eitt mikilvægasta cýtókínið við veirusýkingu [129] og rannsóknir sem nota mismunandi tilraunalíkön lýsa IL-6 breytingum við WNV sýkingu (tafla S1). Cýtókínrannsóknir í mönnum eftir WNV sýkingu benda mjög til mikilvægs hlutverks fyrir IL-6. Bráð sýking í mönnum gæti valdið mikilli nýmyndun IL-6 í CSF [130] og sermi [130.131] sjúklinga með WNV hita og WNV taugaífarandi sjúkdóm. Ennfremur, í annarri rannsókn, voru IL-6 gildi í sermi lægri hjá heilbrigðum veiruveikum einstaklingum samanborið við ósýkta einstaklinga fyrir og eftir IgM sermisbreytingu [124]. Greint hefur verið frá IL-6 langvarandi tjáningu í sermi einstaklinga sem finna fyrir alvarlegri langvarandi þreytu í kjölfar WNV sýkingar með einkennum [132]; Hins vegar hafa engar rannsóknir enn verið gerðar til að styðja orsakasambandið milli IL-6 stiga og alvarleika sjúkdómsins sem tengist WNV hjá mönnum. Ein rannsókn in vivo rannsakaði þátttöku IL-6 í WNV sýkingu [67] og lýsti því að þegar þær voru sýktar af WNV sýndu IL-6-skortar mýs svipaða dánartíðni og villigerðar mýs [67] . Frekari vinnu er þörf til að skýra hvort þetta sé vegna minniháttar hlutverks þessa cýtókíns í WNV sýkingu eða vegna sérstakra tilraunaaðstæðna sem notuð eru í þessari rannsókn
2.3. Interleukin 17 Fjölskylda
Sem stendur tákna 6 bólgusýtókín IL-17 fjölskylduna, nefnilega IL-17A, IL-17B, IL-17C, IL-17D, IL{ {6}}E og IL-17F [133]. Þar á meðal er IL-17A, bólgueyðandi frumuvaka, uppstýrt in vitro [43] og in vivo [43,76,85] eftir WNV sýkingu (tafla S1). Hjá mönnum, án einkenna, fannst hækkuð IL-17 gildi hjá WNV-sýktum einstaklingum samanborið við gildi frá ósýktum blóðgjöfum [29]. Þvert á móti fundust mjög lág sermisþéttni IL-17A, sem og algjör fjarvera IL-17A tjáningar í heila- og mænuvökva [130], bæði hjá sjúklingum með hita og taugaífarandi sjúkdóma. Hjá fjórum sermisfræðilega staðfestum WNV sjúklingum með viðvarandi einkenni eftir sýkingu var ekki hægt að greina aukningu á IL-17 [125]. Þessar niðurstöður, sem benda til tengsla milli IL-17A tjáningar og hagstæðrar niðurstöðu WNV sýkingar í mönnum, eru studdar af einni in vivo rannsókn á músum, þar sem þær komust að því að IL-17A auðveldaði úthreinsun WNV með því að örva tjáning frumudrepandi miðlunargena og stuðla að CD8+ frumueitrun T-frumu [43].
2.4. Interleukin 12 Fjölskylda
IL-12 fjölskyldan inniheldur fjóra meðlimi: IL-12, IL-23, IL-27 og IL-35 [134], þar á meðal IL{{6 }} og IL-23 eru uppstýrðar in vivo eftir WNV sýkingu (tafla S1). IL-12 er samsett úr tveimur samgildum tengdum undireiningum, p40 og p35, sem myndast þegar þær eru sameinaðar lífvirka IL-12p70 [134]. IL-23 samanstendur einnig af tveimur undireiningum, p19 og p40, og sú síðarnefnda er deilt með IL-12 [134]. Eins og er hafa engar rannsóknir á mönnum bent á breytingar á IL-23 eftir WNV sýkingu, en greint var frá því að IL-12 væri mjög tjáð hjá foreinkennalausum og einkennalausum WNV sýktum blóðgjöfum [29] og óbreytt hjá einkennum WNV sýktum blóðgjafar á fyrstu stigum sýkingar [34]. Cýtókíngreiningar hjá WNV-sýktum einstaklingum staðfestu að IL-12p70 gæti verið oftjáð í sermi mánuðum [132] og jafnvel árum [135] eftir sýkingu. Mýs sem skorti einstakar undireiningar IL-12 (p35) IL-23 (p19) eða sameiginlegu p40 undireiningarinnar voru notaðar til að ákvarða sérstakt hlutverk hvers frumu. Dýr sem skorti IL-12p40 eða IL-23p19, en ekki IL-12p35, höfðu minnkað tilkomu hvítkorna til heilans og aukið dánartíðni, sem styður mikilvægi IL-23 í verndandi íferð ónæmisfrumna og heimsendingu á bráða fasa sýkingar [82].
Fleiri rannsóknir eru nauðsynlegar til að varpa ljósi á þátttöku þessara frumuefna á batastigi frá WNV sýkingu.
2.5. Interleukin 10 Fjölskylda
Cýtókínafjölskyldan IL-10 inniheldur IL-10, IL-19, IL-20, IL-22, IL-24, IL{{6 }}, IL-28 og IL-29 [114], þar á meðal eru IL-10 og IL-22 tjáning uppstýrð í líkönum af WNV sýkingu (tafla S1). Aukið magn IL-10 greindist í blóðvökva bráða, veirufræðilegra [124], einkennalausra blóðgjafa sem greindust með WNV [29]. Hins vegar fannst enginn marktækur munur á IL-10 í sermi [130,131] og CSF [130] sýnum frá sjúklingum með WNV hita og WNV taugaífarandi sjúkdóm [130]. Erfðafræðileg eða lyfjafræðileg hindrun á IL-10 merkjasendingum hjálpaði til við að auka lifun eftir WNV banvæna áskorun í músum [79], og viðbótarrannsóknir staðfesta sjúkdómsvaldandi hlutverk IL-10 í bráðri WNV sýkingu. Í fyrsta lagi leiddi fyrri ofnæmi fyrir próteinum í munnvatni frá mörgum A. aegypti bitum til aukinnar IL-10 tjáningu í tengslum við versnandi sjúkdóm [136]. Í öðru lagi, hjá músum sem voru sýktar af WNV-stofni af hamstri, var minnkuð IL-10-framleiðsla í tengslum við lægri tíðni vírusviðhalds í milta samanborið við WNV NY99-sýktar músa [78]. Eina rannsóknin til að rannsaka IL-22 lýsti lágmarksáhrifum á jaðrinum, en mýs sem skorti IL-22 voru ónæmari fyrir banvænni WNV sýkingu og IL-22 stuðlaði að því að veira kom snemma inn - flytja daufkyrninga inn í miðtaugakerfið með því að stjórna krabbameinslyfjum (aðallega með Cxcr2 merkjum) við blóð-heila þröskuldinn (BBB) [42].
3. Chemokines í WNV sýkingu
Kemókín eru efnafræðileg cýtókín sem bindast G prótein-tengdum viðtökum til að beina hreyfingu frumna meðan á jafnvægi stendur og bólgu [114]. Þessum próteinum er skipt í fjórar undirfjölskyldur: C chemokine, CC chemokine, CXC chemokine og CX3C chemokine, byggt á fjölda og staðsetningu varðveittra N-enda cystein leifa [114]. Breytingar á tjáningu chemokines og viðtaka þeirra hafa sést sem svar við WNV sýkingu í spendýralíkönum (tafla S2). Rannsóknir sem beinast að chemokines viðtökum, þar á meðal Ccr2, Ccr5, Ccr7, Cxcr2, Cxcr3, Cxcr4 og Cx3cr1 í WNV-sýktum líkönum hafa hjálpað til við að skilgreina mikilvægi chemokines á tíma- og líffærasértækan hátt (tafla 1). Hins vegar getur hver þessara viðtaka tengst nokkrum efnafræðilegum efnum og fáar skýrslur um þátttöku efnaskipta í WNV sýkingu eru til hingað til, þar á meðal CCL2, CCL7 og CXCL10 (tafla 1). Nákvæmt mikilvægi einstakra krabbameinslyfja við WNV sýkingu krefst því frekari rannsókna.
3.1. CC Chemokines
3.1.1. CCL2, CCL7 og CCL12 (Ccr2 örvar)
Ccr2 og bindlar þess gegna mikilvægu hlutverki við virkjun einfruma við bólguskilyrði [137], og þeir geta verið framkallaðir í kjölfar tilrauna WNV sýkinga (tafla S2). Ccr2 örvi CCL2 er mjög tjáður við WNV sýkingar í mönnum. CCL2 genatjáningin er uppstýrð í heilavef sjúklinga sem láta undan WNV heila- og mergbólgu [56]. Samkvæmt því var CCL2 framleiðsla marktækt hækkuð í sermi WNV-sýktra sjúklinga [124], þar sem karlkyns blóðgjafar höfðu hærra magn af CCL2 en kvenkyns blóðgjafar eftir IgM fasa [33]. Ennfremur var hækkun á CCL2 í seroconversion fasa eftir IgM tengd bættum einkennum eftir WNV sýkingu [33,34]. Meðan á WNV sýkingu stóð, olli virkjun Ccr2 einfrumu sem var háð CCL2 og CCL7, en ekki CCL12, og verndaði mýs gegn banvænum áskorun aðallega með því að stjórna þéttni einstofna í blóði [44]. CCL2-miðlaði flutning einfruma í sýkta húðhúðina og tæmandi eitla, svo og endurkomu þeirra úr blóði í beinmerg og aðgreining þeirra í DCs á fyrstu stigum í WNV-sýktum músum [89]. CCL2 miðlaði einnig uppsöfnun bólgueininga í heilanum og aðgreining þeirra yfir í microglia dró úr lifun og gegndi því sjúkdómsvaldandi hlutverki í WNV heilabólgu [90]. Hins vegar, í annarri rannsókn sem notaði múslíkön, tók CCL2 aðeins að hluta þátt í nýliðun einfruma og gegndi ekki lykilhlutverki í lifun eftir banvæna áskorun [45]. Aftur á móti leiddi skortur á CCL7 til aukins veiruálags í heila, aukinnar dánartíðni og seinkun á flutningi daufkyrninga og CD8+ T frumna inn í miðtaugakerfið [45]. CCL7 lækkaði marktækt hjá mönnum með verri útkomu samanborið við þá sem fengu betri útkomu í eftir IgM fasa [34]. Þó að hlutverk CCL2 í meinmyndun WNV sé enn óleyst, virðist CCL7 hafa hagstæð áhrif, sem bætir niðurstöðu WNV sýkingar.
3.1.2. CCL3, CCL4 og CCL5 (Ccr5 örvar)
CCR5 og samskipti þess við chemokine bindla miðla efnafræðilegri virkni í hvítfrumum og taka þátt í blóðmyndun og ónæmissvörun [138]. Ekki var hægt að greina CCL3, 4 og 5 chemokines sem bindast chemokine viðtakanum Ccr5 í sermi manna á fyrstu og seinustu stigum sýkingar [34,124] en voru sterklega framkölluð í miðtaugakerfi músa eftir tilrauna WNV sýkingu (tafla S2). Hjá mönnum var skortur á Ccr5 ekki tilhneigingu til WNV sýkingar, en eftir sýkingu gætu sjúklingar verið sérstaklega viðkvæmir fyrir snemma og seint klínísk einkenni ef Ccr5 virkni þeirra vantaði eða stíflaðist [35,36,139]. Í samræmi við þessar niðurstöður lýsa rannsóknir á músum því að skortur á Ccr5 leiddi til aukinnar einkennasjúkdóms og dánartíðni eftir sýkingu undir húð með WNV, þó að Ccr5 hafi ekki verið krafist fyrir frumumiðlað ónæmi í jaðri [32,93]. WNV-sýktar Ccr5-/- mýs höfðu marktækt skerta getu til að safna veirueyðandi einkjarna frumum sérstaklega inn í WNV-sýktan heila þeirra, aukið gegndræpi BBB og hækkað magn Ccr5 bindla [32,93]. Einstök hlutverk Ccr5 bindlanna eru enn óljós þar sem engin in vivo líkön hafa verið notuð til að takast á við framlag þeirra til WNV meinmyndunar. Ein in vitro rannsókn lýsti því að framköllun CCL5 sem svar við WNV sýkingu væri ekki nægjanleg til að stuðla að flutning hvítkorna yfir æðaþelslagið í líkani af BBB sem inniheldur bæði æðaþelsfrumur og stjarnfrumur [140].
3.1.3. CCL19 og CCL21 (Ccr7 örvar)
Milliverkanir milli Ccr7 og tengda bindla þess taka þátt í framkalli bólgu- og T-frumuviðbragða [141]. WNV sýking í múslíkönum styður að Ccr7 og bindlar CCL19 og CCL21 gætu verið uppstýrðir á genastigum [64,76,110] og stuðlað að mótstöðu hýsilsins gegn WNV. Chemokine viðtakinn Ccr7 var nauðsynlegur til að lifa af eftir WNV banvæna áskorun í músum [46]. Ennfremur var Ccr7 krafist fyrir íferð mergfruma inn í eitla og takmarkaði innkomu þeirra inn í heilann, aðstoðaði við veiruúthreinsun og minnkaði sjúkleg áhrif of mikillar frumumyndunar [46].
3.2. CXC Chemokines
3.2.1. CXCL1-3, CXCL6-8 (Cxcr2 örvar)
Cxcr2 gegnir óþarfi hlutverki við að miðla verslun með daufkyrninga, sem talið er að séu burðarefni WNV í blóði [49]. Mýs sem skortir Cxcr2 höfðu svipaða dánartíðni og villigerðar mýs, þó að tími þeirra til dauða hafi seinkað [49]. Cxcr2 binst CXCL1, CXCL2, CXCL3, CXCL5, CXCL6, CXCL7 og CXCL8 [114], sem öll eru mótuð af WNV sýkingu (tafla S2). CXCL8 er uppstýrt í WNV-sýktum frummenningum [88] og frumulínum [18,52,57,75,88,98] sem og heila- og mænusýnum úr tilraunasýktum Rhesus öpum (Macaca mulatta) [77]. Gen tengd CXCL8 framleiðslu og uppstjórnun voru framkölluð í hvítum kanínum á Nýja Sjálandi (Oryctolagus cuniculus) [68]. CXCL8 er einnig greint í miklu magni hjá WNV-sýktum einstaklingum [131,135]. Ennfremur höfðu sjúklingar með alvarlegri einkenni á fyrstu stigum sýkingar marktækt hærri CXCL8 tjáningu í sermi sínu samanborið við WNV-neikvæðar samanburðarhópa [34]. Þessar niðurstöður benda til mikilvægs hlutverks þessa cýtókíns í meingerð náttúrulegra sýkinga í mönnum. Samt, hingað til, hafa engar in vivo rannsóknir rannsakað þessa athugun. Þetta má útskýra með skorti á sönnum CXCL8 homologum í músum [142], sem eru nú mest notaðar dýralíkönin til að rannsaka meingerð WNV.
Með því að nota önnur WNV líkön af sýkingu sem hafa ortolog CXCL8 gen, eins og kanínur [70.143-146] og ómannlegir prímatar, [77.147] verður nauðsynlegt til að sniðganga þetta mál.
Hvað gerir cistanche - Anti-bólgueyðandi
3.2.2. CXCL9 og CXCL10 (Cxcr3 bindlar)
Cxcr3 and its ligands are responsible for T-cell trafficking, activation, differentiation, and functions [48]. WNV natural infection in humans can induce high levels of CXCL9 [124] and CXCL10 [34,124,131,135] in the serum. Likewise, these chemokines were elevated following WNV infection in various experimental models (Table S2). Evidence from these models suggests that Cxcr3 signaling can have multifaced roles during WNV infection. In vitro, downregulation of neuronal CXCR3 signaling through TNF receptor 1 (TNFR1) decreased CXCL10 and resulted in apoptosis following WNV infection [99]. In vivo, Cxcr3 had no effect on WNV replication or clearance in peripheral lymphoid tissues [47]. However, CXCL10, but not CXCL9, and its cognate receptor Cxcr3 were required for survival after lethal WNV challenge and regulated the CD8+ T cells migration and clearing of WNV infection in the brain compared to control mice [47,48]. This can explain the evidence of both protective and deleterious effects of CXCL10 in humans. Higher susceptibility to WNV in blood donors was marked by lower levels of CXCL10/IP-10 during the post-IgM phase [33,34]. Importantly, analysis of autopsied neural tissues from humans with WNV encephalomyelitis revealed upregulation of the CXCL10-coding gene [56], and symptom development was positively correlated with CXCL10/IP-10 production during the earliest phase of the disease [34]. In later stages, significantly higher serum levels of CXCL10 were detected in patients with prolonged post-infection fatigue (>6 mánuðum) eftir einkenni WNV sýkingu [132]. Þannig þarf CXCL10 umskipti frá því að keyra verndandi ónæmissvörun yfir í skaðleg svörun frekari rannsókna sem hugsanlegt meðferðarmarkmið.
3.2.3. CXCL12 (Cxcr4 bindill)
Cxcr4 er mest tjáður chemokine viðtakinn og tekur þátt í frumuflutningi, blóðmyndun og frumuheimsókn [148]. Hægt er að framkalla breytingar á tjáningu Cxcr4 og kanónískum bindlum CXCL12 í kjölfar tilrauna WNV sýkingar (tafla S2), en tjáningarmynstur þeirra hjá WNV sýktum sjúklingum er enn óljóst. Núverandi vísbendingar um tilraunasýkingar benda til þess að CXCL12 styðji WNV taugasýkingu. CXCL12 tjáning, sem var miðlað af IL-1 í miðtaugaæðakerfi [54], takmarkaði inngöngu T-frumna á BBB og kom í veg fyrir að veirusértækar CD8+ T-frumur hreinsuðu WNV innan miðtaugakerfisins, sem leiðir til aukinnar dánartíðni í múslíkani af sýkingu [100].

Cistanche deserticola - bólgueyðandi
Smelltu hér til að skoða Cistanche vörur
【Biðja um meira】Netfang:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
3.3. CX3C Chemokines
Chemokine CX3CL1 og viðtakinn CX3CR1 geta haft bólgueyðandi eða bólgueyðandi viðbrögð [149]. Kóðunargenin þeirra voru uppstýrð in vivo eftir WNV sýkingu í B6129PF2 og C57BL6/J músum [32] og Rhesus öpum [77] (tafla S2). Rannsókn á múslíkani studdi ekki að þeir hefðu hlutverk sem hjálpar til við að lifa af gegn WNV sýkingu [32].
4. Æxlisdrepsþáttur ofurfjölskyldubindlar
Samskipti milli TNFSF bindla og tengdra viðtaka þeirra stjórna lifun, fjölgun, aðgreiningu og virkni ónæmisfrumna [111]. Meðal TNFSF bindla, TNF- [72,99,103-105], Fas bindill (FasL) [39,76,110], TNF-tengdur frumufrumuvirkjandi bindill (TRAIL) [69,109,110], CD40L [85,111], B-frumuvirkjunarþáttur (BAFF) [112], TNF tengdur veikburða örvun frumudauða (TWEAK) [85], OX40L [117], og æxlisdrepsþáttur yfirfjölskyldumeðlimur 14 (LIGHT) [76.150] eru tengdir við meingerð WNV (tafla S3).
4.1. Æxlisdrepsþáttur
TNF-, frumuvaka sem hefur for- og bólgueyðandi eiginleika [151], hefur ósamræmi tjáningarmynstur eftir WNV sýkingu í mönnum. Sermisgreining á mönnum meðan á WNV hita og WNV taugaífarandi sjúkdómi stóð sýndi enga greinanlega breytingu á TNF-tjáningu [131], en aðrar lýsa marktækri TNF-uppstýringu hjá WNV-sýktum sjúklingum á bráðastiginu [124,130] og jafnvel löngu eftir að veiran hafði væntanlega verið hreinsað af ónæmiskerfinu [125]. TNF- var marktækt hærra hjá einstaklingum með sögu um WNV sýkingu og síðari þróun langvinns nýrnasjúkdóms samanborið við heilbrigða einstaklinga [135]. Samkvæmt síðarnefndu skýrslum manna lýsa næstum allar rannsóknir sem nota tilraunalíkön aukinni TNF- við WNV sýkingu (tafla S3). Rannsóknir sem rannsaka mikilvægi TNF- í meingerð WNV sýkingar benda til þess að þetta frumulyf gegni takmörkuðu hlutverki við að stjórna WNV sýkingu í útlægum líffærum [38,104], án samstöðu um merkjafallið og framlag til að stjórna WNV í miðtaugakerfi (tafla S3) ). Til dæmis var bent á TNF-viðtaka 1 (TNF-R1) boð niðurstreymis Toll-like receptor (TLR)-3, þar sem skortur á TLR3 leiddi til skertrar TNF-framleiðslu við WNV sýkingu í örveru [67], en sama athugun átti sér ekki stað í beinmerg-afleiddum DCs [152]. Þó að í einni rannsókn hafi mýs sem skortir TNF-R1 verið með marktækt hærri dánartíðni en í villigerð músum eftir WNV áskorun [104], kom fram hið gagnstæða fyrirbæri í annarri rannsókn sem notaði sama líkan [67]. Fyrri rannsóknin benti til þess að TNF-víxlverkun við TNF-R1 verndaði mýs gegn WNV sýkingu með því að stjórna flutningi bólgufrumna inn í heilann við bráða sýkingu [104], en sú síðarnefnda benti til þess að TNF gæti verið ábyrgur fyrir snemmtækri WNV taugainnrás vegna aukið gegndræpi BBB [67]. Bólusetning músa með íhlutum munnvatnskirtla leiddi til snemma framleiðslu á TNF- í kjölfar WNV sýkingar, sem var í takt við seinkun á sýkingu í miðtaugakerfi og marktækt lægri WNV heilatítra samanborið við sýndar ónæmisbundnar mýs [153], sem bendir til verndarhlutverks við WNV heilabólgu. Hins vegar lýsti önnur rannsókn hærra TNF-gildum sem staðfesti aukna meinvirkni taugaífarandi WNV afbrigða samanborið við afbrigði sem ekki eru taugaífarandi í músum, [73] og TNF- tók þátt í WNV-völdum taugaeiturverkunum [52]. Viðbótarrannsóknir eru nauðsynlegar
4.2. TRAIL og FasL
TRAIL og FasL virkja apoptosis í gegnum frumuyfirborðsdauðaviðtaka [111]. Þessi cýtókín eru uppstýrð á genastiginu með því að nota in vivo líkön, þar á meðal músum (tafla S3). Í múslíkönum stuðlar TRAIL að sjúkdómsupplausn [38], á meðan hlutverk FasL er enn fimmtugt [28,39]. Hjá músum jók TRAIL erfðafræðilegur skortur næmni fyrir banvænni WNV áskorun og CD8+ T frumur áttu í erfiðleikum með að hreinsa WNV úr taugafrumum [38]. Tjáning Fas af völdum WNV í taugafrumum, virkt FasL var krafist til að vernda IFN-skort C57BL/6 mús gegn banvænum WNV sýkingu og CD8+ T frumur notuðu FasL til að takmarka WNV sýkingu í taugafrumum [39]. Hins vegar, önnur rannsókn með sömu músum sem skorti annaðhvort Fas eða FasL fann ekki mun á dánartíðni eða veiruálagi í heila [28]. Ósamkvæmar niðurstöður úr þessum rannsóknum má rekja til mismunar á veirustofnum (WNV 3000.0259 stofn [39] á móti WNV Sarafend stofni [28]) sem og leið dýrasýkingar (fótpúði [39] á móti leið í bláæð [28]) .
4.3. CD40L
CD40L er mótunartæki fyrir margs konar húmor og frumu ónæmissvörun [111] og er stjórnað af WNV sýkingu í músarheila [64]. Hjá músum voru CD40-CD40L milliverkanir nauðsynlegar til að verjast banvænum WNV áskorun, skilvirkri mótefnaframleiðslu B-frumna og T-frumuflutninga yfir BBB [40]. Þó að vísbendingar séu um hlutverk CD40L í WNV sýkingu, er þörf á frekari rannsóknum.
4.4. BAFF
BAFF er nauðsynlegt fyrir útlæga B-frumulifun og jafnvægi og er uppstillt í daufkyrningum í músum og DCs eftir WNV áskorun [112]. BAFF boð voru nauðsynleg til að lifa af gegn banvænum WNV sýkingu í músum [41]. BAFF frá DCs, ekki daufkyrningum, hjálpaði til við að viðhalda eða stuðla að B-frumu húmorsvörun við WNV þar sem WNV-sértæk mótefnasvörun var minnkuð í músum sem skorti BAFF tjáningu á DCs [112]. Ennfremur voru mýs með skorti á BAFF viðtaka næmar fyrir WNV sýkingu en gætu þróað viðvarandi verndandi ónæmi þegar þær voru meðhöndlaðar með ónæmissermi frá villigerð mús með mótefnum gegn WNV [41].

cistanche plöntuaukning ónæmiskerfi
5. Ályktanir
Cýtókíneinkenni táknar stórt framfarir í skilningi okkar á heildarstjórnun á WNV-drifin ónæmissvörun. Cýtókínmerki um IL-1, IL-23, IL-17A, CCL7, CXCL10, TRAIL, CD40L og BAFF verndar gegn bráðri WNV sýkingu í músum; IL-10 og IL-22 hjálpa til við WNV sjúkdómsvaldandi áhrif; IL-6 og IL-12 höfðu engin augljós áhrif meðan á sýkingu stóð; og CCL2, TNF-, og FasL hlutverk eru enn óviðráðanleg. Það getur verið krefjandi að ákvarða nákvæma virkni tiltekins frumuefna og undirstrikar mikilvægustu skilaboðin úr þessari endurskoðun: Í fyrsta lagi líffræðilega samhengið, svo sem frumuuppsprettu, markmið, fasa ónæmissvörunar og tilvist eða fjarveru annarra cýtókín hafa áhrif á tjáningarmynstur þeirra og virkni. Tilraunaskilyrði, sem eru mismunandi eftir rannsóknunum, eins og veirustofnar eða veiruleiðir, rannsóknaraðferðir á rannsóknarstofu og tímasetningar sýnatöku, gætu einnig útskýrt ósamræmdar, stundum þversagnarkenndar niðurstöður varðandi hlutverk cýtókína við WNV sýkingu. Í öðru lagi eru niðurstöður WNV sýkingar ekki aðeins háðar veiruúthreinsun heldur einnig umfangi bólgusvörunar sem knúin er áfram af cýtókínum. WNV sýkingar í mönnum og tilraunadýrum gefa vísbendingar um að bólgueyðandi frumudrep, eins og IL-1, TNF-, IL-12p70, CXCL10 og IL-6, geti verið langvarandi hækkuð eftir WNV er hreinsað. Þetta gefur til kynna að áhrifarík meðferð gegn WNV taugaífarandi sjúkdómi ætti að innihalda bólgueyðandi lyf til að meðhöndla versnandi bólgusvörun á bráða fasanum og til að koma í veg fyrir langvarandi taugakvilla, þar sem þessi frumufrumur eru tengd taugafrumum í nokkrum taugahrörnunarsjúkdómum [154] . Framtíðarrannsóknir eru mikilvægar til að skilja hvernig stjórnun þessara frumuefna getur bætt gang veikinda. Þetta er hægt að ná með því að rannsaka fyrirliggjandi lyf eða litlar sameindir gegn fyrrnefndum frumudrepum, sem og þróun nýrra meðferða sem trufla þessar frumuleiðir. Að lokum undirstrikar þessi endurskoðun þörfina á frekari rannsóknum á þessum frumukínum, með hliðsjón af líffræðilegu mikilvægi þeirra, sem mun hjálpa til við að bera kennsl á ónæmisbælandi meðferðarmarkmið gegn WNV taugaífarandi sjúkdómi. Til dæmis ætti að þróa önnur sýkingarlíkön fyrir rannsóknir á CXCL8, sem hefur verið hindrað hingað til vegna skorts á raunverulegum homologum í rottum og músum. Meiri vinna sem miðar að því að greina hlutverk mikilvægra cýtókína sem sýnd eru úr klínískum rannsóknum á mönnum, eins og IL-15, CCL8, CCL11, CCL13 og CCL20, er ástæða til að skilja framlag þeirra til ónæmissjúkdómamyndunar WNV sýkingar.
Heimildir
1. Chambers, TJ; Hahn, CS; Galler, R.; Rice, CM Flavivirus erfðamengiskipulag, tjáning og afritun. Annu. Séra Microbiol. 1990, 44, 649–688. [Krossvísun]
2. McLean, RG; Ubico, SR; Docherty, DE; Hansen, WR; Sileo, L.; McNamara, TS Vestur-Nílar vírussending og vistfræði í fuglum. Ann. NY Acad. Sci. 2001, 951, 54–57. [CrossRef] [PubMed]
3. Chen, S.; Wu, Z.; Wang, M.; Cheng, A. Innate Immune Evasion miðlað af Flaviviridae próteinum sem ekki eru uppbygging. Veirur 2017, 9, 291. [CrossRef] [PubMed]
4. Roosendaal, J.; Westaway, EG; Khromykh, A.; Mackenzie, JM Stýrðar klofnar við West Nile Virus NS4A-2K-NS4B tengi gegna stóru hlutverki í endurskipulagningu frumuhimnu og Golgi verslun með NS4A próteinið. J. Virol. 2006, 80, 4623–4632. [Krossvísun]
5. Samuel, CE gestgjafi erfðafræðilegur breytileiki og næmi fyrir vírusum í Vestur-Níl. Frv. Natl. Acad. Sci. Bandaríkin 2002, 99, 11555–11557. [CrossRef] [PubMed]
6. Bai, F.; Ashley Thompson, E.; Vig, PJS; Arturo Leis, A. Núverandi skilningur á klínískum einkennum West Nile veiru, ónæmissvörun, taugainnrás og ónæmismeðferð. Sýklar 2019, 8, 193. [CrossRef] [PubMed]
7. Petersen, LR; Brault, AC; Nasci, RS; Smitandi, Z.; Þjónusta, H.; Collins, F. West Nile Virus: Review of the Literature. JAMA 2013, 310, 308–315. [Krossvísun]
8. Alli, A.; Ortiz, JF; Atoot, A.; Atoot, A.; Millhouse, PW Stjórnun á West Nile heilabólgu: Sjaldgæfur fylgikvilli West Nile veira. Cureus 2021, 13, e13183. [Krossvísun]
9. Ouhoumanne, N.; Lowe, AM; Fortin, A.; Kairy, D.; Vibien, A.; K-Lensch, J.; Tannenbaum, TN; Milord, F. Sjúkdómar, dánartíðni og langvarandi afleiðingar af West Nile veirusjúkdómnum í Québec. Faraldur. Smitast. 2018, 146, 867–874. [Krossvísun]
10. Fulton, CDM; Beasley, DWC; Bente, DA; Dineley, KT Langtíma taugabreytingar af völdum West Nile veira: samanburður á sjúklingum og nagdýralíkönum. Hegðun heilans. Ónæmi. Heilsa 2020, 7, 100105. [Krossvísun]
11. Veðurhaus, JE; Miller, VE; Garcia, MN; Hasbun, R.; Salazar, L.; Dimachkie, MM; Murray, KO Langtíma taugafræðilegar niðurstöður í West Nile veirusýktum sjúklingum: Athugunarrannsókn. Am. J. Trop. Med. Hyg. 2015, 92, 1006–1012. [CrossRef] [PubMed]
12. Tebas, P.; Spitsin, S.; Barrett, JS; Tuluc, F.; Elci, O.; Korelitz, JJ; Wagner, W.; Winters, A.; Kim, D.; Catalano, R.; o.fl. Minnkun leysanlegs CD163, efnis P, forritaðs dauðsfalls 1 og bólgumerkja: 1. stigs rannsókn á Aprepitant í HIV-1-sýktum fullorðnum. AIDS 2015, 29, 931–939. [CrossRef] [PubMed]
13. Suthar, MS; Diamond, MS; Gale, M., Jr. West Nile veirusýking og ónæmi. Nat. Séra Microbiol. 2013, 11, 115–128. [Krossvísun]
14. Shrestha, B.; Diamond, MS Hlutverk CD8 + T frumna við að stjórna West Nile veirusýkingu. J. Virol. 2004, 78, 8312–8321. [CrossRef] [PubMed]
15. Zimmerman, MG; Bowen, JR; McDonald, CE; Pulendran, B.; Suthar, MS West Nile veirusýking hindrar bólgusvörun og T-frumuhjálpargetu tannfrumna sem eru afleiddar af einfrumum úr mönnum. J. Virol. 2019, 93, e00664-19. [Krossvísun]
16. Ramos, HJ; Lanteri, MC; Blahnik, G.; Negash, A.; Suthar, MS; Brasilíu, MM; Sodhi, K.; Treuting, PM; Busch, þingmaður; Norris, PJ; o.fl. IL-1 merki stuðlar að innri ónæmisstjórnun í miðtaugakerfi á sýkingu af vesturnílarveiru. PLoS Pathog. 2012, 8, e1003039. [Krossvísun]
17. Martina, BEE; Koraka, P.; van den Doel, P.; Rimmelzwaan, GF; Haagmans, BL; Osterhaus, ADME DC-SIGN eykur sýkingu frumna með glýkósýleruðum West Nile veiru in vitro og veira eftirmyndun í mannlegum dendritic frumum veldur framleiðslu á IFN- og TNF-. Virus Res. 2008, 135, 64–71. [Krossvísun]
18. Kong, K.; Wang, X.; Anderson, J.; Fikrig, E.; Montgomery, RR West Nile veira dregur úr virkjun aðalátfrumna manna. Veiru Immunol. 2008, 21, 78–82. [Krossvísun]
19. Kumar, M.; Roe, K.; O'Connell, M.; Nerurkar, VR Framleiðsla á veiru-sértækum áhrifaónæmisfrumuviðbrögðum takmarkar afritun veira og alvarlegan sjúkdóm í músum sem eru sýktar af Eg101-stofni Vestur-Nílarveiru sem ekki er banvænn. J. Neuroinflflamm. 2015, 12, 178. [Krossvísun]
20. Cheeran, MCJ; Hu, S.; Sheng, WS; Rashid, A.; Peterson, PK; Lokensgard, JR Mismunandi svörun heilafrumna manna við sýkingu í Vestur-Níl. J. NeuroVirol. 2005, 11, 512–524. [Krossvísun]
21. Kosch, R.; Delarocque, J.; Claus, P.; Becker, SC; Jung, K. Genatjáningarsnið í taugafræðilegum vefjum við sýkingu í Vestur-Níl: A Critical Meta-Aalysis. BMC Genom. 2018, 19, 530. [CrossRef] [PubMed]
22. Hassert, M.; Brien, JD; Pinto, AK Tímalegt hlutverk frumuefna í flaviveiruvernd og meingerð. Curr. Clin. Örverur. þingmaður 2019, 6, 25–33. [Krossvísun]
23. Pan, Y.; Cai, W.; Cheng, A.; Wang, M.; Yin, Z.; Jia, R. Flaviveirur: Meðfædd ónæmi, bólgueyðandi virkjun, bólgufrumudauði og frumudauði. Framan. Immunol. 2022, 13, 829433. [Krossvísun]
24. Bardina, SV; Lim, JK Hlutverk chemokines í meingerð taugatrópískra Flaviveira. Immunol. Res. 2012, 54, 121–132. [Krossvísun]
25. Lee, YH; Leong, WY; Wilder-Smith, A. Markers of Dengue Severity: A Systematic Review of Cytokines and Chemokines. J. Gen. Virol. 2016, 97, 3103–3119. [Krossvísun]
26. Kuczera, D.; Assolini, JP; Tomiotto-Pellissier, F.; Pavanelli, WR; Silveira, GF Hápunktar fyrir dengue ónæmissjúkdóma: Mótefnaháð aukning, frumustormur og víðar. J. Interferon Cytokine Res. 2018, 38, 69–80. [Krossvísun]
27. Maucourant, C.; Queiroz, GAN; Samri, A.; Grassi, MFR; Yssel, H.; Vieillard, V. Zika veira í auga frumustorms. Eur. Cytokine Netw. 2019, 30, 74–81. [CrossRef] [PubMed]
28. Wang, Y.; Lobigs, M.; Lee, EVA; Müllbacher, A. Exocytosis og Fas-miðluð frumugreiningarkerfi veita vernd gegn heilabólgu af völdum West Nile veira í músum. Immunol. Cell Biol. 2004, 82, 170–173. [Krossvísun]
29. Fares-Gusmao, R.; Rocha, BC; Sippert, E.; Lanteri, MC; Áñez, G.; Rios, M. Mismunandi mynstur leysanlegra ónæmismerkja í einkennalausum dengue, West Nile og Zika veirusýkingum. Sci. Rep. 2019, 9, 17172. [Krossvísun]
30. Clark, DC; Brault, AC; Hunsperger, E. Framlag nagdýralíkana til meinafræðilegs mats á flaviviral sýkingum í miðtaugakerfinu. Arch. Virol. 2015, 157, 1423–1440. [Krossvísun]
31. Zimmerman, MG; Bowen, JR; McDonald, CE; Young, E.; Baric, RS; Pulendran, B.; Suthar, MS STAT5: Markmið andstæðinga af taugatrópískum Flaviveirum. J. Virol. 2019, 93, e00665-19. [CrossRef] [PubMed]
32. Gler, WG; Lim, JK; Kólera, R.; Pletnev, AG; Gao, JL; Murphy, PM Chemokine Receptor CCR5 stuðlar að smygli með hvítfrumur til heilans og lifun í Vestur-Nílar veirusýkingu. J. Exp. Med. 2005, 202, 1087–1098. [CrossRef] [PubMed]
33. Hoffman, KW; Lee, JJ; Foster, GA; Krysztof, D.; Stramer, SL; Lim, JK Kynjamunur í frumumyndun í kjölfar sýkingar í Vestur-Níl: Áhrif á einkenni. Pathog. Dis. 2019, 77, ftz016. [CrossRef] [PubMed]
34. Hoffman, KW; Sachs, D.; Bardina, SV; Michlmayr, D.; Rodriguez, CA; Sum, J.; Foster, GA; Krysztof, D.; Stramer, SL; Lim, JK Mismunur á snemmtækri frumuframleiðslu tengist þróun meiri fjölda einkenna í kjölfar West Nile veirusýkingar. J. Infect. Dis. 2016, 214, 634–643. [Krossvísun]
35. Lim, JK; Louie, CY; Glaser, C.; Jean, C.; Johnson, B.; Jónsson, H.; McDermott, DH; Murphy, PM erfðafræðilegur skortur á kemokínviðtaka CCR5 er sterkur áhættuþáttur fyrir einkennandi West Nile veirusýkingu: Meta-greining á 4 árgangum í Bandaríkjunum faraldur. J. Infect. Dis. 2008, 197, 262–265. [Krossvísun]
36. Gler, WG; Mcdermott, DH; Lim, JK; Lekhong, S.; Yu, SF; Frank, WA; Pape, J.; Cheshier, RC; Murphy, PM CCR5 skortur eykur hættu á einkennum West Nile veirusýkingu. J. Exp. Med. 2006, 203, 35–40. [Krossvísun]
37. Rituparna, D.; Kerry, G.; Charles, M.; Feng, Q.; Lin, L.; Yan, S.; Rut, RM; Mark, L.; Richard, B. Samband milli High Expression Macrophage Migration Inhibitory Factor (MIF) samsæta og West Nile Veira heilabólgu. Cytokine 2016, 78, 51-54. [Krossvísun]
38. Shrestha, B.; Pinto, AK; Grænn, S.; Bosch, I.; Diamond, MS CD8+ T frumur nota TRAIL til að takmarka meingerð West Nile veira með því að stjórna sýkingu í taugum. J. Virol. 2012, 86, 8937–8948. [CrossRef] [PubMed]
39. Shrestha, B.; Diamond, MS Fas Ligand víxlverkanir stuðla að CD8 + T-Cell-miðluðum stjórn á West Nile veirusýkingu í miðtaugakerfinu. J. Virol. 2007, 81, 11749–11757. [Krossvísun]
40. Sitati, E.; Mccandless, EE; Klein, RS; Diamond, MS CD40-CD40 bindilvíxlverkun stuðla að verslun með CD8 + T frumur inn í heilann og vernd gegn West Nile Veiru heilabólgu. J. Virol. 2007, 81, 9801–9811. [Krossvísun]
41. Giordano, D.; Draves, KE; Young, LB; Roe, K.; Bryan, MA; Dresch, C.; Richner, JM; Diamond, MS; Gale, M.; Clark, EA Verndun músa sem skortir þroskaðar B frumur frá West Nile veirusýkingu með óvirkri og virkri bólusetningu. PLoS Pathog. 2017, 13, e1006743. [CrossRef] [PubMed]
42. Wang, P.; Bai, F.; Zenewicz, LA; Dai, J.; Hlið, D.; Cheng, G.; Yang, L.; Qian, F.; Yuan, X.; Montgomery, RR; o.fl. IL-22 merkjasending stuðlar að sjúkdómsmyndun í heilabólgu í vesturníl. PLoS ONE 2012, 7, e44153. [CrossRef] [PubMed]
43. Acharya, D.; Wang, P.; Páll, A.; Dai, J.; Hlið, D.; Lowery, J.; Stokic, D.; Leis, A.; Flavell, R.; Town, T.; o.fl. Interleukin-17A stuðlar að geisladiski8+ frumueiturhrifum á T frumu til að auðvelda úthreinsun Vestur-Nílar vírusa. J. Virol. 2017, 91, e01529-16. [CrossRef] [PubMed]
44. Lim, JK; Obara, CJ; Rivollier, A.; Pletnev, AG; Kelsall, BL; Murphy, PM Chemokine Receptor CCR2 er mikilvægur fyrir einfrumuuppsöfnun og lifun í West Nile Veiru heilabólgu. J. Immunol. 2011, 186, 471–478. [Krossvísun]
45. Bardina, SV; Michlmay, D.; Hoffman, KW; Obara, CJ; Sum, J.; Charo, EF; Lu, W.; Pletnev, AG; Lim, JK Mismunandi hlutverk chemokines CCL2 og CCL7 í einfrumu- og hvítfrumnaflutningum við sýkingu í Vestur-Níl. Physiol. Hegðu þig. 2015, 195, 4306–4318. [Krossvísun]
46. Bardina, SV; Brown, JA; Michlmayr, D.; Hoffman, KW Chemokine Receptor Ccr7 takmarkar banvæna West Nile Veiru heilabólgu. J. Virol. 2017, 91, e02409-16. [CrossRef] [PubMed]
47. Klein, RS; Lin, E.; Zhang, B.; Luster, AD; Tollett, J.; Samúel, MA; Engle, M.; Diamond, MS Neuronal CXCL10 stýrir CD8 + T-Cell nýliðun og eftirliti með West Nile Veiru heilabólgu. J. Virol. 2005, 79, 11457–11466. [CrossRef] [PubMed]
48. Zhang, B.; Chan, YK; Lu, B.; Diamond, MS; Klein, RS CXCR3 miðlar svæðissértækri veirueyðandi T-frumusölu innan miðtaugakerfisins meðan á heilabólgu í Vestur-Nílarveiru stendur. J. Immunol. 2008, 180, 2641–2649. [Krossvísun]
49. Bai, F.; Kong, K.; Dai, J.; Qian, F.; Zhang, L.; Brown, CR; Fikrig, E.; Montgomery, RR Þversagnakennt hlutverk fyrir daufkyrninga í meingerð West Nile veira. J. Infect. Dis. 2010, 8031, 1804–1812. [Krossvísun]
50. Brocker, C.; Smiður, C.; Nebert, DW; Vasiliou, V. Þróunarmunur og virkni mannlegs acýl-CoA þíóesterasa gen (ACOT) fjölskyldunnar. Humm. Erfðamengi. 2010, 4, 411–420. [Krossvísun]
51. Kumar, M.; Roe, K.; Orillo, B.; Muruve, DA; Nerurkar, VR; Gale, M.; Verma, S. Inflflammasome Adapter Protein Apoptosis Associated Speck-Like Protein Containing CARD (ASC) er mikilvægt fyrir ónæmissvörun og lifun í West Nile Veiru heilabólgu. J. Virol. 2013, 87, 3655–3667. [CrossRef] [PubMed]
52. Kumar, M.; Verma, S.; Nerurkar, VR Pro-inflammatory Cytokines Afleidd af West Nile Virus (WNV)-sýktum SK-N-SH frumum miðla taugabólgumerkjum og taugadauða. J. Neuroinflflamm. 2010, 7, 73. [Krossvísun]
53. Soung, AL; Davé, VA; Garber, C.; Tycksen, ED; Vollmer, LL; Klein, RS IL-1 Endurforritun á fullorðnum taugastofnfrumum takmarkar taugavitrænan bata eftir veiruheilabólgu með því að viðhalda bólgueyðandi ástandi. Hegðun heilans. Ónæmi. 2022, 99, 383-396. [Krossvísun]
54. Durrant, DM; Daniels, BP; Klein, RS IL-1R1 merki stjórnar CXCL12-miðlaðri T-frumustaðsetningu og örlögum innan miðtaugakerfisins meðan á heilabólgu í Vestur-Nílarveiru stendur. J. Immunol. 2014, 193, 4095–4106. [CrossRef] [PubMed]
55. Riccetti, S.; Sinigaglia, A.; Desole, G.; Nowotny, N.; Trevisan, M.; Barzon, L. Modeling West Nile Virus and Usutu Veira sjúkdómsvaldandi áhrif í taugastofnfrumum manna. Veirur 2020, 12, 882. [CrossRef] [PubMed]
56. van Marle, G.; Antony, J.; Ostermann, H.; Dunham, C.; Hunt, T.; Halliday, W.; Maingat, F.; Urbanowski, læknir; Hobman, T.; Peeling, J.; o.fl. Taugabólga af völdum West Nile Veira: Glial sýking og Capsid Protein-miðlaðar taugaveiru. J. Virol. 2007, 81, 10933–10949. [Krossvísun]
57. Qian, F.; Chung, L.; Zheng, W.; Bruno, V.; Alexander, RP; Wang, Z.; Wang, X.; Kurscheid, S.; Zhao, H.; Fikrig, E.; o.fl. Auðkenning gena sem eru mikilvæg fyrir sýkingarþol frá Vestur-Nílarveiru með því að nota RNA-Seq greiningu. Veirur 2013, 5, 1664–1681. [Krossvísun]
58. Yao, Y.; Strauss-Albee, DM; Zhou, JQ; Malawista, A.; Garcia, MN; Murray, KO; Blish, CA; Montgomery, RR Náttúruleg morðfrumuviðbrögð við West Nile vírus hjá ungum og gömlum einstaklingum með eða án fyrri sögu um sýkingu. PLoS ONE 2017, 12, e0172625. [Krossvísun]
59. Aarreberg, LD; Wilkins, C.; Ramos, HJ; Grænn, R.; Davis, MA; Chow, K.; Gale, M. Interleukin-1 Merkjasendingar í dendritic frumum veldur veirueyðandi interferónsvörun. mBio 2018, 9, e00342-18. [Krossvísun]
60. Uddin, MJ; Suen, WW; Bosco-Lauth, A.; Hartwig, AE; Hall, RA; Bowen, RA; Bielefeldt-Ohmann, H. Kinetics of the West Nile Virus Induced Transscriptions of Selected Cytokines and Toll-like Receptors in Equine Peripheral Blood Mononclear Cells. Dýralæknir. Res. 2016, 47, 61. [Krossvísun]
61. Bielefeldt-Ohmann, H.; Bosco-lauth, A.; Hartwig, A.; Uddin, MJ; Barcelona, J.; Suen, WW; Wang, W.; Hall, RA; Bowen, RA Örverusjúkdómsgerð Einkennun á sýkingu sem ekki banvænar Vestur-Nílarveiru (WNV) í hrossum: undirklínísk meinafræði og meðfædd ónæmissvörun. Örvera. Pathog. 2017, 103, 71–79. [CrossRef] [PubMed]
62. Byrne, SN; Halliday, GM; Johnston, LJ; King, NJC Interleukin-1 en ekki æxlisdrep þáttur í langerhans frumuflutningi af völdum Vestur-Nílar veira úr húðinni í C57BL/6 músum. J. Rannsókn. Dermatol. 2001, 117, 702–709. [CrossRef] [PubMed]
63. Garber, C.; Vasek, MJ; Vollmer, LL; Sun, T.; Jiang, X.; Klein, RS Stjörnufrumur draga úr taugamyndun fullorðinna meðan á vírusvöldum minnistruflunum stendur með Interleukin-1. Nat. Immunol. 2018, 19, 151–161. [CrossRef] [PubMed]
64. Kumar, M.; Nerurkar, VR samþætt greining á míkróRNA og sjúkdómstengdum markmiðum þeirra í heila músa sem eru sýktir af West Nile vírus. Veirufræði 2014, 452–453, 143–151. [Krossvísun]
65. Lim, SM; van den Ham, HJ; Oduber, M.; Martina, E.; Zaaraoui-Boutahar, F.; Roose, JM; van IJcken, WFJ; Osterhaus, ADME; Andeweg, AC; Koraka, P.; o.fl. Transcriptomic greiningar sýna mismunandi genatjáningu á ónæmis- og frumudauðaleiðum í heila músa sem eru sýktar af West Nile veiru og Chikungunya veiru. Framan. Örverur. 2017, 8, 1556. [Krossvísun]
66. Xiea, G.; Weltea, T.; Wanga, J.; Whitemanb, MC; Wickerb, JA; Saxenaa, V.; Conga, Y.; Barretta, ADT; Wang, T. A West Nile Veira NS4B-P38G stökkbreytt stofn framkallar aðlögunarónæmi með TLR7-MyD88-háðum og óháðum boðleiðum. Bóluefni 2013, 31, 4143–4151. [Krossvísun]
67. Wang, T.; Town, T.; Alexopoulou, L.; Anderson, JF; Fikrig, E.; Flavell, RA Toll-eins viðtaki 3 miðlar innkomu Vesturnílarveiru í heilann sem veldur banvænum heilabólgu. Nat. Med. 2004, 10, 1366–1373. [Krossvísun]
68. Suen, WW; Uddin, MJ; Prow, NA; Bowen, RA; Hall, RA; Bielefeldt-Ohmann, H. Vefjasértæk umritunarsnið af cýtókín- og kemokíngenum sem tengjast Flavivirus Control og non-drepandi taugasjúkdómamyndun í kanínum. Veirufræði 2016, 494, 1–14. [CrossRef] 69. Quick, ED; Leser, JS; Clarke, P.; Tyler, KL Virkjun á eðlislægri ónæmissvörun og örveruátfrumubólgu í Ex Vivo mænusneiðaræktunarlíkani af West Nile veirusýkingu. J. Virol. 2014, 88, 13005–13014. [Krossvísun]
70. Uddin, MJ; Suen, WW; Prow, NA; Hall, RA; Bielefeldt-Ohmann, H. West Nile Virus Challenge breytir umritunarsniði meðfæddra ónæmisgena í einkjarnafrumum í útlægum kanínum. Framan. Dýralæknir. Sci. 2015, 2, 76. [Krossvísun]
71. Shirato, K.; Miyoshi, H.; Kariwa, H.; Takashima, I. Hreyfifræði bólgueyðandi frumna í kviðarholi músa sem eru sýktir af hjúppróteini-glýkósýleruðu eða óglýkósýleruðu West Nile veiru. Virus Res. 2006, 121, 11–16. [CrossRef] [PubMed]
72. Saxenaa, V.; Weltea, T.; Baob, X.; Xiea, G.; Wanga, J.; Higgsc, S.; Teshd, RB; Wang, T. Vestur-Nílar veirustofn af hamstur er mjög veikburða og veldur mismunandi bólgueyðandi frumuviðbrögðum í tveimur músfrumulínum. Virus Res. 2013, 167, 179–187. [CrossRef] [PubMed]
73. Sapkal, GN; Harini, S.; Ayachit, VM; Fulmali, PV; Mahamuni, SA; Bondre, VP; Gore, MM Neutralization Escape Variant of West Nile Veira sem tengist breyttum útlægum sjúkdómsvaldandi áhrifum og mismunandi frumufrumuvirkni. Virus Res. 2011, 158, 130–139. [CrossRef] [PubMed] 74. Fang, H.; Welte, T.; Zheng, X.; Chang, G.-JJ; Holbrook, MR; Soong, L.; Wang, T. δd T frumur stuðla að þroska tannfruma við sýkingu í Vestur-Níl. FEMS Immunol. Med. Örverur. 2010, 59, 71–80. [CrossRef] [PubMed]
75. Garcia, M.; Alout, H.; Diop, F.; Damour, A.; Bengue, M.; Weill, M.; Missé, D.; Lévêque, N.; Bodet, C. Meðfædd ónæmissvörun frumkeratínfrumna manna við veirusýkingu í Vestur-Níl og mótun hennar með munnvatni moskítóflugna. Framan. Cell. Smitast. Örverur. 2018, 8, 387. [Krossvísun]
76. Peña, J.; Plante, JA; Carillo, AC; Roberts, KK; Smith, JK; Juelich, TL; Beasley, DWC; Freiberg, AN; Labute, MX; Naraghi Arani, P. Multiplexed Digital MRNA Profifiling of the bólgusvörun í West Nile Swiss Webster Mouse Model. PLoS Negl. Trop. Dis. 2014, 8, e3216. [Krossvísun]
77. Maximova, OA; Sturdevant, DE; Kash, JC; Kanabandi, K.; Xiao, Y.; Minai, M.; Moore, IN; Taubenberger, J.; Martens, C.; Cohen, JI; o.fl. Veirusýking í miðtaugakerfi truflar ónæmis-tauga-taugaásinn með örvun á Pleiotropic genastjórnun á svörun hýsils. Elife 2021, 10, e62273. [Krossvísun]
78. Saxena, V.; Xie, G.; Li, B.; Farris, T.; Welte, T.; Gong, B.; Boor, P.; Wu, P.; Tang, SJ; Tesh, R.; o.fl. Vestur-Nílar veirueinangruð hamstur veldur viðvarandi nýrnasýkingu í músum. PLoS Negl. Trop. Dis. 2013, 7, e2275. [Krossvísun]
79. Bai, F.; Town, T.; Qian, F.; Wang, P.; Kamanaka, M.; Connolly, TM; Hlið, D.; Montgomery, RR; Flavell, RA; Fikrig, E. IL-10 Merkjablokkun stjórnar Murine West Nile veirusýkingu. PLoS Pathog. 2009, 5, e1000610. [Krossvísun]
80. Xie, G.; Luo, H.; Tian, B.; Mann, B.; Bao, X.; Mcbride, J.; Tesh, R.; Barrett, AD; Wang, T. A West Nile Veira NS4B-P38G stökkbreytt stofn veldur frumu innri meðfæddri frumuviðbrögðum í einfrumu- og stórfrumum úr mönnum. Bóluefni 2015, 33, 869–878. [Krossvísun]
81. Graham, JB; Swarts, JL; Wilkins, C.; Thomas, S.; Grænn, R.; Sekine, A.; Voss, KM; Ireton, RC; Mooney, M.; Choonoo, G.; o.fl. Múslíkan af langvinnum Vestur-Nílar veirusjúkdómi. PLoS Pathog. 2016, 12, e1005996. [CrossRef] [PubMed]
82. Bær, T.; Bai, F.; Wang, T.; Kaplan, A.; Qian, F.; Montgomery, R.; Anderson, J.; Flavell, RA; Fikrig, E. Toll-like Receptor 7 dregur úr banvænum West Nile heilabólgu með Interleukin 23-háð ónæmisfrumuíferð og heimsendingu. Ónæmi 2009, 30, 242–253. [CrossRef] [PubMed]
83. Welte, T.; Reagan, K.; Fang, H.; Macchain-Williams, C.; Zheng, X.; Mendell, N.; Chang, GJJ; Wu, P.; Blair, geisladiskur; Wang, T. Toll-like Receptor 7-Induced Immune Response to Cutaneous West Nile Veirsýkingu. J. Gen. Virol. 2009, 90, 2660–2668. [CrossRef] [PubMed]
84. Luo, H.; Winkelmann, ER; Zhu, S.; Ru, W.; Mays, E.; Silvas, JA; Vollmer, LL; Gao, J.; Peng, BH; Bopp, NE; o.fl. Peli1 auðveldar afritun vírusa og stuðlar að taugabólgu við sýkingu í Vestur-Níl. J. Clin. Rannsaka. 2018, 128, 4980–4991. [Krossvísun]
85. Clarke, P.; Leser, JS; Bowen, RA; Tylera, KL vírusframkallaðar umritunarbreytingar í heilanum fela í sér mismunatjáningu gena sem tengjast interferóni, apoptosis, interleukin 17 viðtaka A og glútamatboðum auk Flaviveiru-sértækrar uppstjórnunar á TRNA myndun. mBio 2014, 5, e00902-14. [Krossvísun]
86. Bourgeois, MA; Denslow, ND; Seino, KS; Rakari, DS; Löng, MT genatjáningargreining í thalamus og heila á hrossum sem hafa verið sýktir af West Nile vírus. PLoS ONE 2011, 6, e24371. [Krossvísun]
87. Garcia-Tapia, D.; Hassett, DE; Mitchell, WJ, Jr.; Johnson, GC; Kleiboeker, SB West Nile Veira heilabólga: Röð vefjameinafræðilegir og ónæmisfræðilegir atburðir í múslíkani af sýkingu. J. NeuroVirol. 2007, 13, 130–138. [Krossvísun]
88. Munoz-Erazo, L.; Natoli, R.; Provis, JM; Madigan, MC; Jónatan, N.; King, C. Örfylkisgreining á genatjáningu í Vestur-Nílar veiru-sýktum sjónhimnulitarefnisþekju. Mol. Vis. 2012, 18, 730–743.
89. Davison, AM; King, NJC Hröðun tannfrumuaðgreiningar frá flutningi Ly6C Lo beinmergseinfrumna í snemma húðsýkingu í Vestur-nílarveiru. J. Immunol. 2011, 186, 2382–2396. [Krossvísun]
90. Getts, DR; Terry, RL; Getts, MT; Marcus, M.; Rana, S.; Shrestha, B.; Radford, J.; van Rooijen, N.; Campbell, IL; King, NJC Ly6c+ „Bólgandi einfrumur“ eru örverur sem eru ráðnir á sjúkdómsvaldandi hátt í heilabólgu í Vestur-Nílarveiru. J. Exp. Med. 2008, 205, 2319–2337. [Krossvísun]
91. Michlmayr, D.; McKimmie, CS; Pingen, M.; Haxton, B.; Mansfifield, K.; Johnson, N.; Fooks, AR; Graham, GJ Að skilgreina chemokine grundvöll fyrir nýliðun hvítkorna meðan á veiruheilabólgu stendur. J. Virol. 2014, 88, 9553–9567. [Krossvísun]
92. Vidaña, B.; Johnson, N.; Fooks, AR; Sánchez-Cordón, PJ; Hicks, DJ; Nuñez, A. West Nile vírusútbreiðsla og mismunandi chemokine svörun í miðtaugakerfi músa: Hlutverk í sjúkdómsvaldandi verkun heilabólgu. Yfirbundið. Koma fram. Dis. 2020, 67, 799–810. [CrossRef] [PubMed]
93. Durrant, DM; Daniels, BP; Pasieka, T.; Dorsey, D.; Klein, RS CCR5 takmarkar veiruálag í heilaberki við sýkingu í vesturnílarveiru í miðtaugakerfinu. J. Neuroinflflamm. 2015, 12, 233. [CrossRef] [PubMed]
94. Qian, F.; Goel, G.; Meng, H.; Wang, X.; Þú, F.; Devine, L.; Raddassi, K.; Garcia, MN; Murray, KO; Bolen, CR; o.fl. Kerfisónæmisfræði sýnir merki um næmni fyrir sýkingu í Vestur-Níl. Clin. Bóluefni Immunol. 2015, 22, 6–16. [CrossRef] [PubMed]
95. Suthar, MS; Brasilíu, MM; Blahnik, G.; McMillan, A.; Ramos, HJ; Proll, SC; Belisle, SE; Katze, MG; Gale, M. A Kerfislíffræðiaðferð leiðir í ljós að vefjaveðrandi til vesturnílarveiru er stjórnað af veirueyðandi genum og meðfæddum ónæmisfrumuferlum. PLoS Pathog. 2013, 9, e1003168. [Krossvísun]


